
血液腫瘤科 陳駿逸醫師
腫瘤微環境中的免疫細胞與癌細胞,實質上正進行一場極其殘酷的「代謝糧草爭奪戰」。
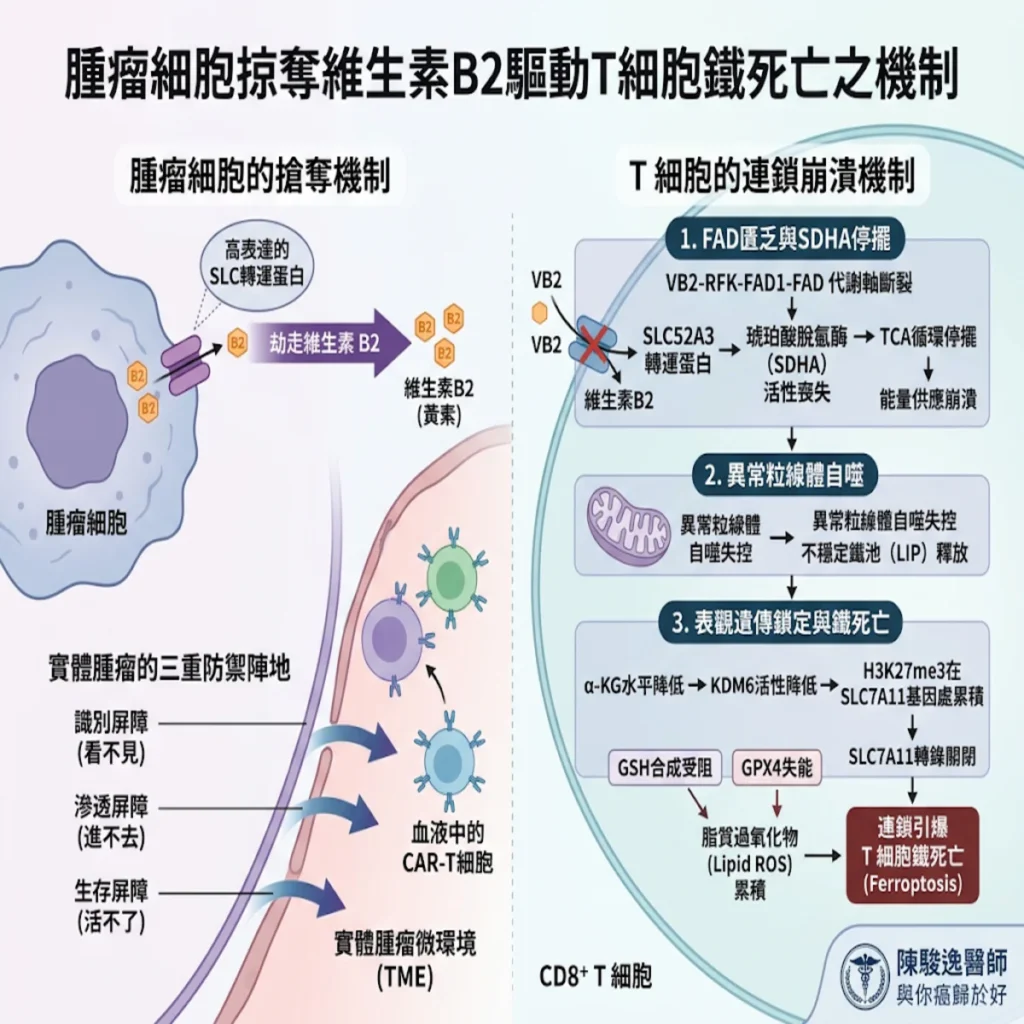
CAR-T 細胞療法在血液腫瘤(如 ALL、DLBCL)中如同擁有精準導航與強大火力的空中部隊,能輕鬆殲滅癌細胞;但一旦進入肺癌、大腸癌或肝癌等實體腫瘤的泥濘戰場,這群精銳的 T 細胞卻常迅速「全軍覆沒」。傳統理論多歸咎於 PD-1/PD-L1 免疫檢查點(Immune Checkpoints)或物理基質屏障,但最新重磅研究揭開了一個更深層的機制:腫瘤細胞宛如現代戰爭中的後勤破壞者,透過高表達的溶質載體(Solute Carrier, 簡稱SLC)轉運蛋白,直接切斷了 T 細胞的補給線,劫走生存關鍵物資維生素 B2(Vitamin B2, Riboflavin),進而透過表觀遺傳的鎖定(Epigenetic Locking)連鎖引爆 T 細胞的鐵死亡(Ferroptosis)!
戰局困境:實體癌症的三重防禦陣地與 TRSLC 篩選機制
實體癌症藉由建構「看不見、進不去、活不了」的三重防禦陣地,徹底封鎖了傳統免疫細胞療法的殺傷效能。
- 識別屏障(看不見):
腫瘤異質性(Tumor Heterogeneity)與抗原丟失,讓 CAR-T 細胞失去標靶。
- 滲透屏障(進不去):
緻密的大腦/腫瘤基質(Stroma)與趨化因子(Chemokine)失衡,使 T 細胞無法有效的浸潤(Infiltration)。
- 生存屏障(活不了):
腫瘤微環境中極度缺氧、高乳酸、低糖且高度營養剝奪,導致浸潤後的 T 細胞快速衰竭(Exhaustion)與死亡。
為了找出這座「代謝堡壘」的致命漏洞,研究團隊構建了 TRSLC (T cell-Receptive SLC) 全基因組 CRISPR/Cas9 功能篩選平台。這套系統鎖定了包含 500 多個成員的 SLC 轉運蛋白超家族(Solute Carrier Superfamily),針對 378 個 SLC 轉運蛋白進行負向篩選(Negative Selection)。
在以泛癌靶點 GPC2 為 CAR 骨架的 CD8+ T 細胞多輪腫瘤共培養淘汰賽中,SLC52A3 脫穎而出。數據顯示,一旦失去 SLC52A3,T 細胞在高壓 TME 中將迅速崩潰。這證實了 SLC52A3 是 CD8+ T 細胞在惡劣微環境下維持生存不可或缺的「後勤閘門」。
後勤補給線:SLC52A3 與 RFK-FAD1 代謝軸
SLC52A3 是 T 細胞攝取維生素 B2 的核心通道,驅動 RFK-FAD1 的代謝軸以維持粒線體呼吸鏈的正常運作。
維生素 B2 在體內無法自行合成,必須由 SLC52A3 轉運進細胞內。在臨床腫瘤檢體中,大腸直腸癌患者的腫瘤浸潤 T 細胞(TILs)若高表達 PD-1 等衰竭標記,其 SLC52A3 的表達量會顯著下降。一旦 SLC52A3 被敲除(KO),T 細胞的記憶亞群(Memory Subsets)比例會劇減,體內抗腫瘤的擴增能力全線停擺。
維生素 B2 進入細胞後的轉化鏈條極為精密,可透過以下步驟維繫細胞命脈:
1.細胞內攝取維生素 B2:SLC52A3 介導。
CD8+ T 細胞利用膜蛋白 SLC52A3 將微環境中的游離維生素 B2(Riboflavin)高效轉運至胞漿內。
2.黃素單核苷酸(FMN)生成:RFK 磷酸化。
胞漿內的黃素激酶(Riboflavin Kinase, RFK)消耗一分子 ATP,將 VB2 磷酸化為具有生物活性的輔酶 FMN。
3.黃素腺嘌呤二核苷酸(FAD)合成:FAD1/FLAD1 腺苷醯化。
FAD 合成酶(FAD1/FLAD1)進一步將 FMN 轉化為 FAD。FAD 是粒線體內多種關鍵氧化還原酶的必需輔基。
4.呼吸鏈複合體 II 賦能:SDHA 結合 FAD。
FAD 嵌入線粒體呼吸鏈複合體 II(琥珀酸脫氫酶,SDHA),維持三酸循環(TCA Cycle)與電子傳遞鏈(ETC)的能量流轉。
這條「VB2-RFK-FAD1-FAD」代謝軸就是 T 細胞的糧草線。一旦這條戰略補給被腫瘤細胞攔截,粒線體的呼吸鏈便會瞬間失能。
前線崩潰:粒線體 Stop-Work 與鐵死亡連鎖反應
當腫瘤細胞掠奪維生素 B2 導致 FAD 匱乏時,T 細胞的粒線體複合體 II(SDHA)隨即停擺,並引爆異常粒線體的自噬與鐵死亡。
如果把 T 細胞比喻為前線作戰的鋼鐵雄師,粒線體就是其動力心臟,而 FAD 就是這座心臟的火星塞。當腫瘤細胞憑藉強大的 SLC 蛋白陣列搶走維生素 B2,T 細胞內部的連鎖崩潰便開始上演:
- 動力心臟熄火(SDHA 停擺):
缺乏 FAD 輔基,琥珀酸脫氫酶(SDHA)活性喪失,琥珀酸(Succinate)無法轉化為延胡索酸(Fumarate),TCA 循環與氧耗率(OCR)驟降,ATP 的產量歸零。
- 異常的粒線體自噬(Mitophagy)失控:
受損粒線體觸發 LC3-II/LC3-I 的比值升高,粒線體與溶酶體大量融合降解。這種過度的自噬過程並未拯救細胞,反而將粒線體內的血紅素鐵與鐵硫簇大量釋放至胞漿。
- 引爆鐵死亡(Ferroptosis):
游離的不穩定鐵池(Labile Iron Pool)急劇擴大,催化 Fenton 反應,導致細胞膜的脂質過氧化物呈指數級累積。透射電子顯微鏡下可清晰觀察到粒線體的體積萎縮、膜密度增加及線粒體脊斷裂消失等典型的鐵死亡病理特徵。
這好比在俄烏戰爭的現代戰場上,一支部隊雖然裝備了先進的穿甲彈(CAR 結構),但因為後勤補給線(維生素 B2)被敵軍的無人機與火炮(腫瘤 SLC 載體)完全封鎖,導致發電機燃料耗盡。缺乏電力運作防空系統,車輛內的彈藥庫(不穩定鐵池)被敵方精準打擊,引發內部殉爆(鐵死亡),整支部隊未戰先癱。
表觀遺傳鎖定:α-KG 缺失與 SLC7A11 防禦陣地失守
TCA 的循環停擺導致中間代謝物 α-KG 驟減,抑制 KDM6 去甲基化酶,使 H3K27me3 抑制性修飾關閉 SLC7A11-GSH-GPX4 抗氧化防線。
面對強烈的氧化應激,T 細胞原本擁有一套頑強的抗氧化防衛系統-SLC7A11-GSH-GPX4 軸(胱氨酸/谷氨酸逆向轉運蛋白)。但在維生素 B2 匱乏的狀態下,這套防線卻被腫瘤細胞透過表觀遺傳學(Epigenetics)實施了「遠程封印」。
α-KG 是去甲基化酶 KDM6 家族運作的必需「鑰匙」。當 α-KG/琥珀酸比值崩潰時,KDM6 無法移除組蛋白 H3 第 27 位賴氨酸的三甲基化(H3K27me3)。這種強效的抑制性染色質修飾就像是在 SLC7A11 基因上鎖上了重型鐵鎖,使得 T 細胞無法攝取胱氨酸,無法合成谷胱甘肽(GSH),最終讓抗氧化酶 GPX4 成為空殼。
實驗證實,給予可穿透膜的 DM-α-KG(Dimethyl-α-ketoglutarate)進行代謝回補,能成功解開 H3K27me3 鎖定,恢復 SLC7A11 表達與 GSH 水平,阻斷 T 細胞鐵死亡。這完美串聯了「代謝物-表觀遺傳-細胞死亡」的完整調控軸。
臨床破局:精準代謝改造與下一代 CAR-T 設計
透過過度表達 SLC52A3 或聯合小分子代謝調控,可重塑 CAR-T 細胞在實體腫瘤微環境中的代謝適應力。
這項機制的揭示,為腫瘤臨床免疫治療開闢了全新戰場。過去我們試圖透過 PD-1 阻斷劑來解開 T 細胞的「煞車」,但如果 T 細胞本身已經因「缺糧」而鐵死亡,解除煞車自然收效甚微。
針對這項代謝瓶頸,臨床轉化策略可聚焦於以下三大突破點:
- CAR-T 基因武裝(Overexpression Strategy):
在 CAR 載體設計中併入 SLC52A3 或 RFK/FAD1 過表達元件。讓 CAR-T 細胞具備超強的維生素 B2搶奪能力,在微環境中與腫瘤細胞爭奪糧草時佔據上風。
- 代謝小分子聯合前導治療(Metabolic Priming):
聯合使用膜穿透性 α-KG 類似物(如 DM-α-KG)或下遊黃素輔酶(FMN/FAD),打破 H3K27me3 的表觀遺傳封鎖,直接維繫 CAR-T 細胞內的 GSH 防線。
- 靶向鐵死亡防衛增強:
過度表達 GPX4 或 SLC7A11,強行維持細胞膜抗氧化能力,保護 CAR-T 細胞免受腫瘤為環境的高脂質 ROS 的摧殘。
臨床轉化潛力評估
|
干預策略 |
分子作用標靶 |
臨床優勢 |
潛在挑戰 |
|
SLC52A3 武裝 CAR-T |
SLC52A3 轉運蛋白 |
從源頭提升 VB2 攝取能力,增強記憶亞群持久性 |
需驗證長期過表達是否影響 T 細胞分化平衡 |
|
DM-α-KG 聯合治療 |
KDM6 / H3K27me3 |
解除表觀遺傳抑制,同步恢復多種代謝抗氧化基因 |
全身性給藥的組織分布與有效濃度控制 |
|
FMN / FAD 輔酶補充 |
SDHA (呼吸鏈複合體 II) |
繞過 SLC52A3 缺失缺陷,直接維持線粒體 ATP |
游離輔酶在 TME 中的穩定性與透膜效率 |
|
GPX4/SLC7A11 增強 |
脂質過氧化物 (Lipid ROS) |
直接阻斷鐵死亡終末通路,保障 T 細胞存活 |
需避免潛在的腫瘤細胞交叉保護風險 |
結語
腫瘤微環境中的代謝競爭,本質上就是一場無聲的後勤糧草割據戰。腫瘤細胞透過搶奪維生素 B2,巧妙地引發了 T 細胞內部的線粒體能源危機與表觀遺傳鎖定,最終以鐵死亡的方式肅清了浸潤的免疫部隊。理解了這層機制,我們便不再只是盲目地增加 CAR-T 的細胞輸入量,而是能夠透過精準2k7代謝改造(Metabolic Engineering),為 CAR-T 細胞裝備防禦武裝。未來,結合 SLC52A3 基因增強與 α-KG 表觀遺傳解鎖的下一代 CAR-T 療法,極有希望突破實體腫瘤的堅固防線,讓免疫細胞治療在實體瘤戰場上迎來真正的勝利曙光!
#CART細胞療法 #實體腫瘤突破 #腫瘤微環境 #代謝戰場
#維生素B2 #SLC52A3 #鐵死亡 #Ferroptosis
#癌症免疫治療 #基因改造CART #表觀遺傳鎖定 #補給線切斷戰
更多陳駿逸醫師的癌症衛教影片請連接https://www.youtube.com/@mycancerfree
更多腫瘤治療相關資訊 請連接”陳駿逸醫師 與你癌歸於好” https://mycancerfree.com
更多癌症病友需知 請連接”全方位癌症關懷協會” https://www.cancerinfotw.org/index.php
歡迎參與臉書社團:陳駿逸醫師的用心話聊俱樂部 www.facebook.com/groups/456281992960876/
陳駿逸醫師醫療門診服務時段
https://mycancerfree.com/contact/