陳駿逸 醫師

00022 37

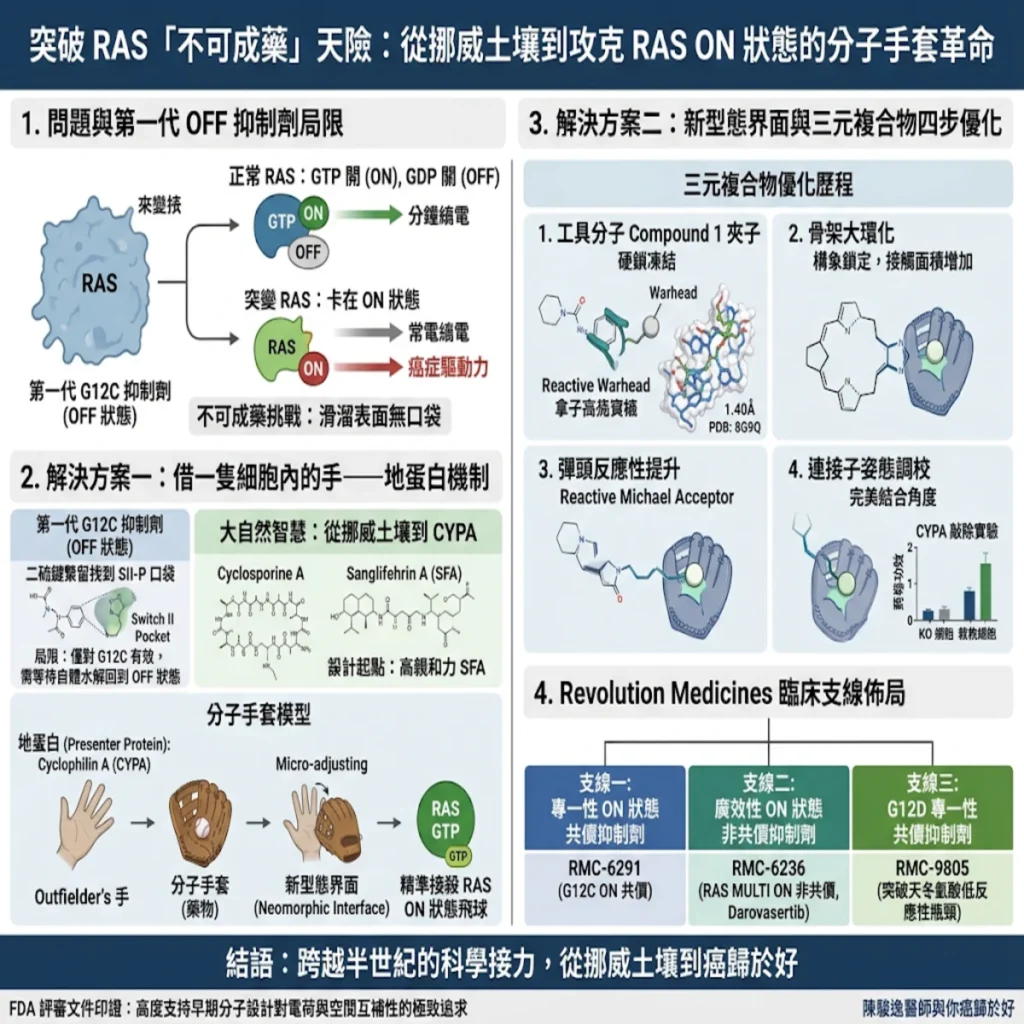
突破RAS「不可成藥」天險:從挪威土壤到攻克 RAS ON 狀態的分子手套革命

血液腫瘤科/細胞治療中心/台灣細胞免疫醫學會 陳駿逸醫師   本篇專門詳述 RAS 標靶藥物突破「不可成藥」(Undruggable)困境的半世紀演進。內容涵蓋第一代 OFF 狀態抑制劑的局限、呈遞蛋白(Presenter Protein)Cyclophilin A(CYPA)誘導的「新型態界面(Neomorphic Interface)」機制、三元複合物(Tri-complex)四步優化歷程,以及 Revolution Medicines 三條臨床藥物支線(RMC-6291、RMC-6236、RMC-9805)的佈局與臨床考量。 一、卡死的分子開關與滑溜溜的 RAS 蛋白 RAS 蛋白的生理開關與 Oncogenic 卡死機制 在正常細胞傳遞路徑中,RAS 蛋白扮演極為嚴謹的分子開關角色: 當與 GDP(二磷酸鳥苷) 結合時,RAS 蛋白的開關處於 關閉(OFF) 狀態。   當與 GTP(三磷酸鳥苷) 結合時,RAS 蛋白的開關轉為 開啟(ON) 狀態,並與下游效應蛋白(Effector Protein,如 RAF 激酶)結合,啟動下遊的 MAPK/ERK 傳訊路徑,驅動細胞增殖與存活。   一旦發生 KRAS、HRAS 或 NRAS 基因突變(常見如 G12C、G12D、G12V 等點突變),GTP 水的解能力喪失或 GEF(鳥苷酸交換因子)的促進作用增強,導致此開關被強行卡在「GTP-bound ON 狀態」,訊息傳訊路徑會持續狂飆,形成腫瘤生長的核心驅動力。   「不可成藥」(Undruggable)的結構學障礙 長期以來,RAS 被視為標靶藥物開發的禁區,主因有二: picomolar 級別的高親和力: RAS 對 GTP/GDP 的親和力極高,且細胞內 GTP 濃度遠高於藥物,傳統競爭性的抑制劑根本無法搶贏 GTP。   光滑無深度口袋的蛋白表面: 傳統小分子藥物如同鑰匙,需要與目標蛋白表面的深口袋(Binding Pocket)緊密結合。但 RAS的表面極為平滑,缺乏小分子可以穩固錨定的空間位阻與相互作用位點。   Tethering 技術與第一代 RAS OFF 抑制劑的開創與瓶頸 2013 年,UCSF 的 Kevin Shokat 團隊利用 二硫鍵繫留技術(Tethering) 帶來了轉機。他們使用帶有共價彈頭的小分子庫,與 KRAS G12
突破RAS「不可成藥」天險:從挪威土壤到攻克 RAS ON 狀態的分子手套革命 閱讀全文 »

00022 34

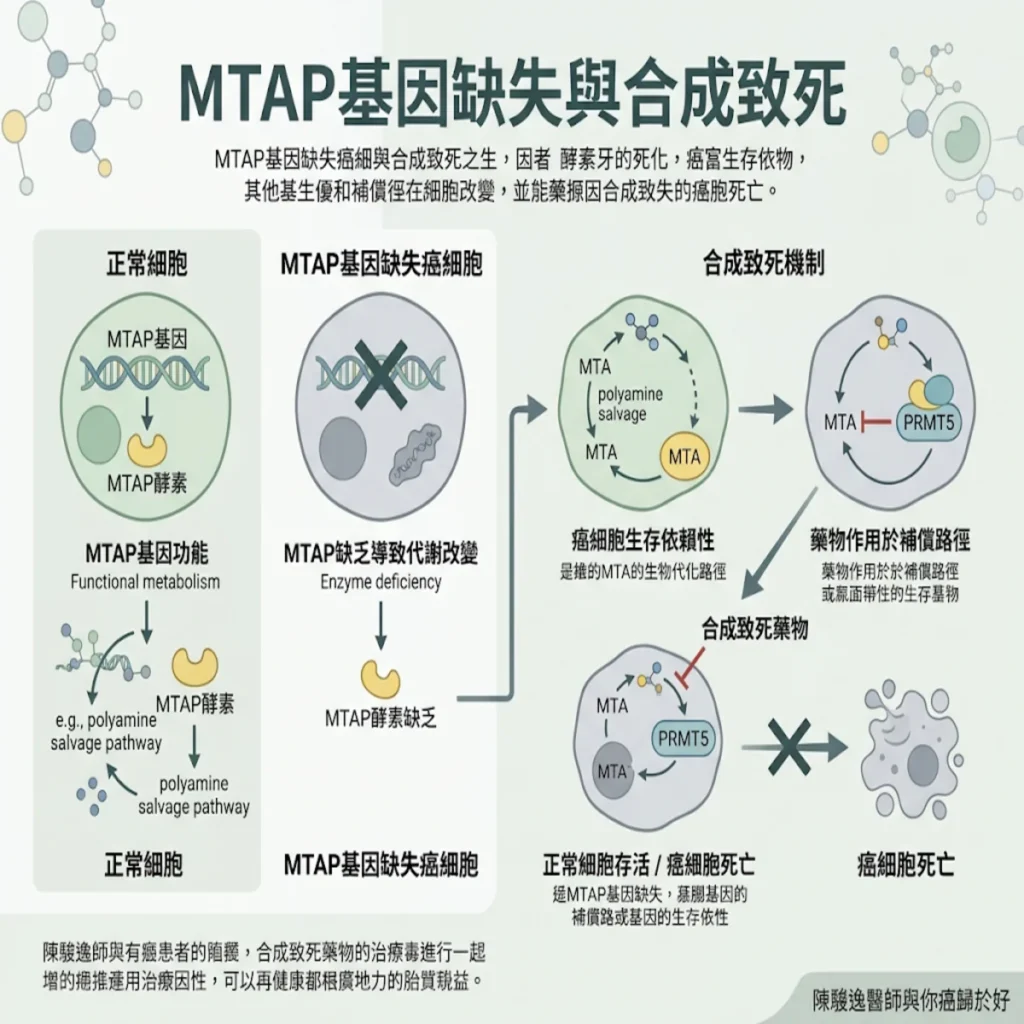
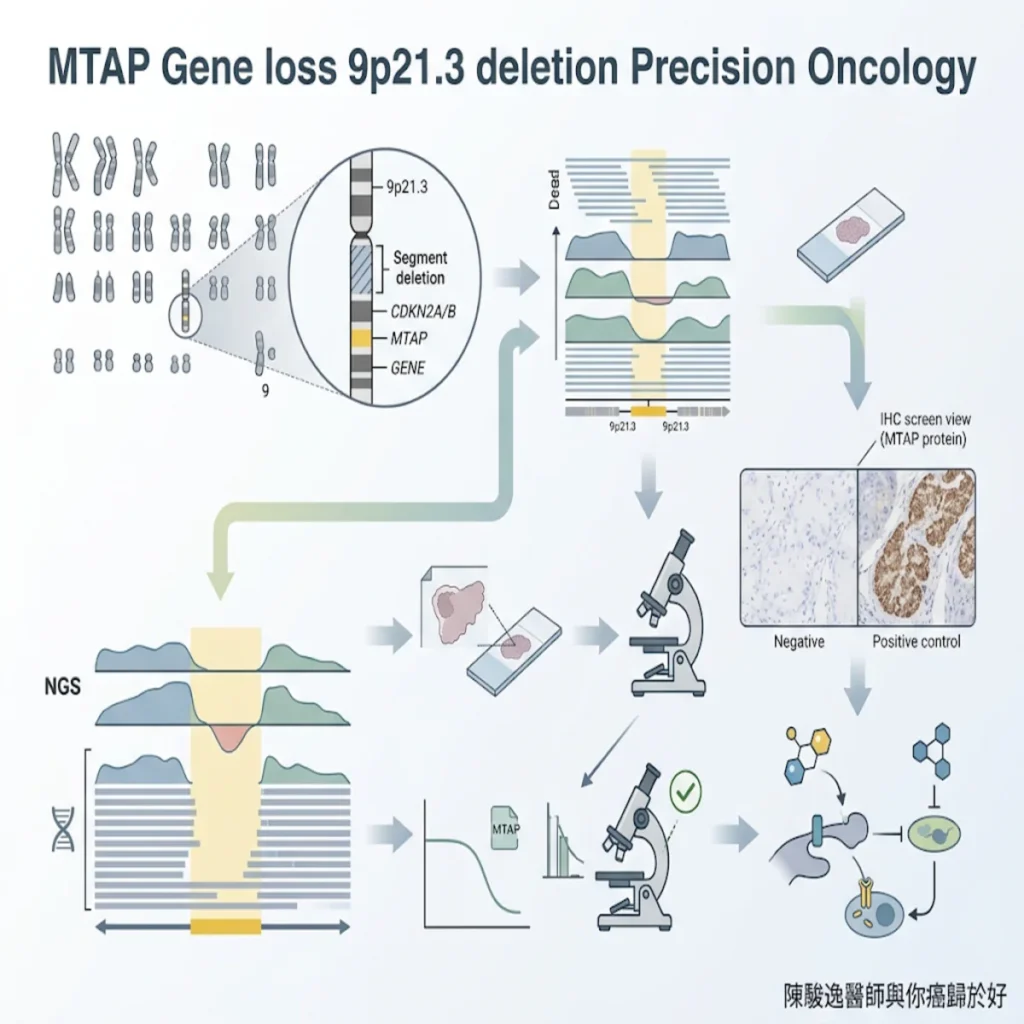
準確攔截 9p21.3 基因缺口:從「NGS + IHC」雙重驗證看 MTAP基因缺失在精準抗癌的臨床決策

血液腫瘤科/細胞治療中心/台灣細胞免疫醫學會 陳駿逸醫師 當腫瘤防線出現 9p21.3 漏洞,MTAP 基因缺失如何成為致命又脆弱的阿基里斯腱?   9p21.3 區段的純合性缺失(Homozygous Deletion)是多種惡性腫瘤中常見的基因組事件,同時夾帶了 CDKN2A/B 與 MTAP 基因的同源遺失。而MTAP 缺失會導致細胞內甲硫腺苷(MTA)異常地堆積,競爭性抑制 PRMT5 與 MAT2A,開闢了合成致死(Synthetic Lethality)的標靶治療新賽道。   在臨床腫瘤學的實務中,我們經常遇到惡性間皮瘤、胰臟癌、非小細胞肺癌以及尿路上皮癌等棘手案件。這些腫瘤在基因體定序中,經常會觀察到第 9 號染色體短臂(9p21.3)的區域性缺失。9p21.3 就像是球隊防線上的核心中衛,當該區段發生純合性缺失時,不僅掌控細胞週期的抑癌基因CDKN2A/B(p16/p14)隨之瓦解,相鄰的甲硫腺苷磷酸磷酸化酶(Methylthioadenosine Phosphorylase, MTAP)基因也常被一併「連坐」刪除了。   從代謝分子學的角度來看,MTAP 酵素在腺苷代謝與甲硫胺酸回收途徑(Methionine Salvage Pathway)中扮演關鍵角色。當 MTAP 基因缺失、蛋白質表達完全喪失後,其底物之甲硫腺苷(Methylthioadenosine, MTA)會在癌細胞內大量蓄積。   正常的健康細胞就像運作良好的歐洲能源市場,能順暢利用 MTAP 酵素(管道)來處理 MTA(天然氣副產物),保持甲硫胺酸(動力能源)的正常循環。但在 MTAP缺失的癌細胞中,這條天然氣管道會被徹底切斷了,導致 MTA 在細胞內大幅囤積。高濃度的 MTA 會直接卡住細胞機器的核心運作-去競合性地抑制了蛋白精氨酸甲基轉移酶 5(PRMT5)。   這時,癌細胞為了生存,極度依賴另一條備用的能源供應鏈(MAT2A 途徑)來維持基本的甲基化功能。這項代謝的脆弱性(Metabolic Vulnerability)正是藥物設計的突破口:臨床上研發的 PRMT5 抑制劑或 MAT2A 抑制劑,就像是在戰爭期間精準封鎖敵方僅存的備用輸油管。當我們切斷 MAT2A,已經囤積高濃度 MTA 的癌細胞便會因為極度缺乏 S-腺苷甲硫胺酸(SAM)而陷入徹底癱瘓,觸發「合成致死(

準確攔截 9p21.3 基因缺口:從「NGS + IHC」雙重驗證看 MTAP基因缺失在精準抗癌的臨床決策 閱讀全文 »

00022 36

破解癌症的「隱形漏洞」:為什麼「NGS + IHC」雙重驗證是解開 MTAP 基因缺失與新世代標靶治療的關鍵鑰匙?

血液腫瘤科/細胞治療中心/台灣細胞免疫醫學會 陳駿逸醫師   當腫瘤防線出現 9p21.3 漏洞,MTAP 基因缺失如何成為致命又脆弱的阿基里斯腱? 9p21.3 區段的純合性缺失(Homozygous Deletion)是多種惡性腫瘤中常見的基因組事件,會同時帶走抑癌基因與 MTAP 基因。   MTAP 缺失會導致細胞內代謝物異常堆積,這種獨特的代謝弱點(Metabolic Vulnerability)為現代精準醫療開闢了「合成致死(Synthetic Lethality)」的全新標靶治療賽道。   在臨床日常中,我們常面對惡性間皮瘤、胰臟癌、非小細胞肺癌以及尿路上皮癌等棘手挑戰。當病患進行基因檢測時,常會發現第 9 號染色體短臂(9p21.3)發生了區域性的「純合性缺失」。這就像是一支原本防守嚴密的棒球隊,內野防線(9p21.3 區段)突然出現了大破洞;不僅掌控細胞生長煞車的抑癌基因(如:CDKN2A/BCDKN2A/BCDKN2A/B)隨之崩潰,連旁邊的「甲硫腺苷磷酸磷酸化酶」(簡稱 MTAP)基因也被一併「連坐」刪除。   從細胞的日常運作來看,MTAP 酵素就像是細胞內的一條重要「環保回收通道」。當這個基因不見了、蛋白質無法表現時,一種名為甲硫腺苷(MTA)的物質就會在癌細胞內大量堆積。這裡我們可以用一個大家很熟悉的「台灣便利超商物流與限電危機」來比喻這個巧妙的機制: 正常的健康細胞就像台北街頭運作流暢的便利超商物流網,能夠透過 MTAP 這條正常的運輸線(管道)順暢處理代謝的副產物,維持能量正常循環。但在 MTAP 缺失的癌細胞中,這條物流主幹道突然因故被徹底封閉了,導致堆積如山的貨物(MTA)卡在倉庫裡出不去。這堆塞車的貨物開始產生「負面干擾」,直接卡住細胞裡負責生長的關鍵引擎(蛋白精氨酸甲基轉移酶 5,簡稱 PRMT5)。   為了活下去,癌細胞只能拼命依賴另一條備用的「地下發電廠」(MAT2A 途徑)來勉強維持生命。這正是科學家眼中的「阿基里斯腱」,一種獨特的代謝脆弱性。新世代的抗癌藥物(如 PRMT5 或 MAT2A 抑制劑)就像是精準的工程團隊,趁著敵方主管道癱瘓、只靠備用發電機運作時,無情地把備用電源也切斷。這時,癌細胞因為體內堆滿垃圾又無電可用,就會徹底崩潰,這就是所謂的「合成致死」。而正常細胞因為原本就有正常的 MTAP 通道保護,完

破解癌症的「隱形漏洞」:為什麼「NGS + IHC」雙重驗證是解開 MTAP 基因缺失與新世代標靶治療的關鍵鑰匙? 閱讀全文 »

00022 35

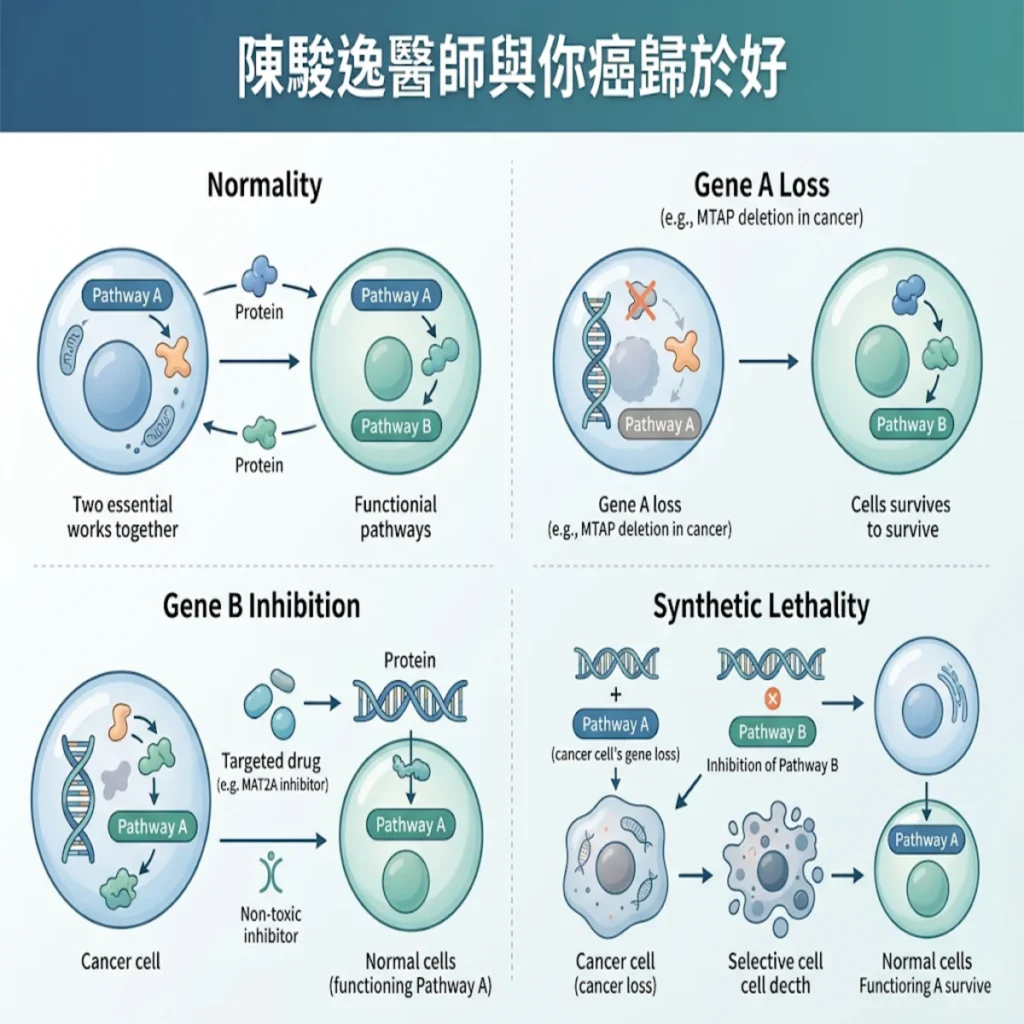
攻克 MTAP基因缺失之癌症:從代謝漏洞到精準標靶的合成致死新紀元

血液腫瘤科/細胞治療中心/台灣細胞免疫醫學會 陳駿逸醫師   MTAP 缺失(MTAP loss)常見於非小細胞肺癌、胰臟癌及間皮瘤,其對傳統療法療效是有限的;運用「合成致死(Synthetic Lethality)」機制的 PRMT5/MTA 協同抑制劑與 MAT2A 抑制劑是目前的突破核心。   在臨床腫瘤學的日常實務中,我們常遭遇基因檢測報告顯示 9p21 染色體的片段缺失(9p21 deletion)的晚期癌症患者。這個區域除了包含著名的 CDKN2A/B 腫瘤抑制基因外,也常連帶地導致了甲基硫腺苷磷酸化酶(Methylthioadenosine Phosphorylase, MTAP) 的功能缺失。   過去,帶有 MTAP基因缺失的腫瘤對傳統化學治療與免疫檢查點抑制劑(Immune Checkpoint Inhibitors)的治療反應普遍較差,預後相對不佳。然而,這個代謝漏洞同時也成了癌細胞的「阿基利斯腱(Achilles’ heel)」。近年來,醫學界利用合成致死(Synthetic Lethality)概念所開發的代謝標靶藥物,正徹底改變這類困難腫瘤的臨床治療格局。   醫學機制拆解:合成致死與代謝漏洞的比喻 MTA 累積與新型 PRMT5/MTA 協同抑制劑(MTA-cooperative PRMT5 Inhibitors) MTAP 酵素的缺失會導致內源性代謝物 MTA 異常地累積,新型 PRMT5/MTA 協同抑制劑能夠利用此特質,達成極高選擇性的腫瘤細胞殺傷力。   正常細胞透過 MTAP 進行多胺代謝(Polyamine pathway)的回收。當 MTAP 基因缺失時,其底物之甲基硫腺苷(Methylthioadenosine, MTA) 會在腫瘤細胞內大量蓄積。MTA 會競爭性地部分結合蛋白精氨酸甲基轉移酶 5(PRMT5)。新型 PRMT5/MTA 協同抑制劑(如 :AMG 193、MRTX1719、TNG462、PF-07820435)能特異性地結合「PRMT5-MTA 複合物」,鎖死 PRMT5 的活性,進而阻斷表觀遺傳調控與 RNA 剪接(RNA splicing),誘發癌症細胞的凋亡。   這就像俄烏戰爭中的特種精準打擊。正常細胞擁有 MTAP的防衛系統,內部的 MTA 濃度極低(就像防守嚴密的後方);而 MT

攻克 MTAP基因缺失之癌症:從代謝漏洞到精準標靶的合成致死新紀元 閱讀全文 »

00022 34

突破腫瘤後勤的精準狙擊:從 9p21/MTAP基因缺失 談「合成致死」策略之臨床演進

血液腫瘤科/細胞治療中心/台灣細胞免疫醫學會 陳駿逸醫師   染色體 9p21 缺失導致的 MTAP 同型合子缺失(Homozygous deletion)為常見於非小細胞肺癌(約17.4%)、間皮瘤及胰臟癌等惡性腫瘤的關鍵分子標記。由於 MTAP 與 CDKN2A 基因相鄰,MTAP 缺失多屬「乘客事件」(Passenger event),卻開闢了全新的治療弱點。利用細胞內 MTA 累積與 SAM 耗竭機制,研發 MTA 協同 PRMT5 抑制劑及 MAT2A 抑制劑進行「合成致死」(Synthetic lethality)的打擊,已成為克服傳統抗藥、改善晚期癌患預後的核心臨床策略。   病因機制:9p21.3 區段的連帶缺失(CDKN2A / MTAP 相鄰)與啟動子過度甲基化,為 MTAP基因缺失的主要成因。當EGFR/KRAS 標靶治療後之 Genomic instability 可以誘發後天演化出獲得性的抗藥 9p21 缺失。而MTAP 缺失會造成體內的MTA 累積,使得PRMT5 酶過度依賴 MAT2A 產生的 SAM 燃料,此為此類癌細胞的代謝弱點。對此之標靶策略是使用PRMT5 抑制劑與 MAT2A 抑制劑聯手所造成的「合成致死」,實現高效能且低毒性之精準打擊。 一、當癌細胞卸下了煞車,卻不小心炸毀了自己的後勤補給線 MTAP 基因的缺失源於 9p21 區域的連帶切除,是癌細胞關閉 CDKN2A 煞車時造成的乘客事件,卻創造了癌細胞代謝上的致命弱點。   在臨床基因體檢測(NGS)普及的今日,我們經常在晚期非小細胞肺癌(NSCLC, 約占 17.4%)、間皮瘤(Mesothelioma)、胰臟癌及膠質母細胞瘤(Glioblastoma)的報告中,觀察到 9p21.3 區段的基因缺失。此區段座落著極為關鍵的抑癌基因 CDKN2A(轉錄轉譯出調控細胞週期的 p16/INK4a 與 p14/ARF 蛋白質)。   癌細胞為了實現無限制的暴利增殖,最直接的手段就是透過純合性的缺失(Homozygous deletion)將 CDKN2A 這尊「細胞週期的煞車器」整塊挖去。然而,由於 MTAP(甲硫腺苷磷酸化酶,Methylthioadenosine phosphorylase)基因與 CDKN2A 之實質物理的距離僅約 100 kb,當腫瘤進行大片段染色體

突破腫瘤後勤的精準狙擊:從 9p21/MTAP基因缺失 談「合成致死」策略之臨床演進 閱讀全文 »

00022 33

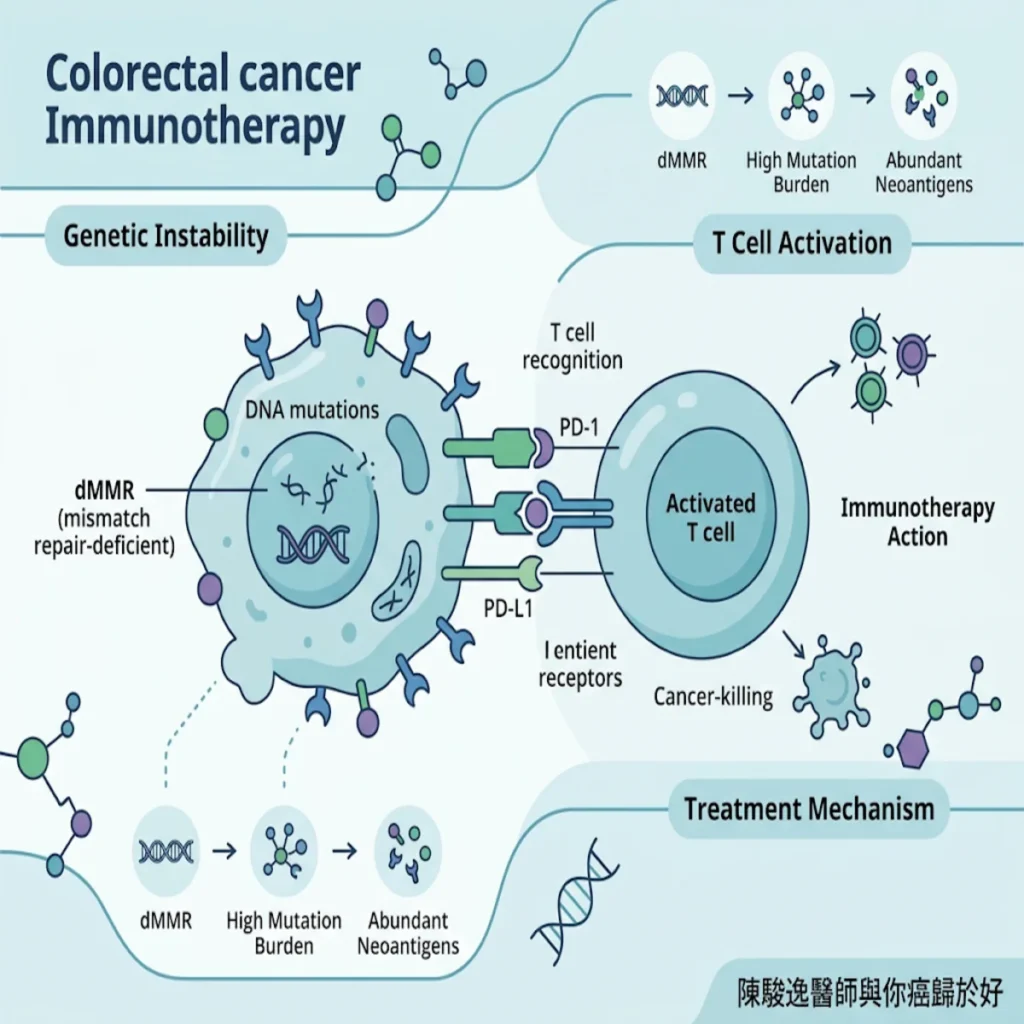
防禦再升級!破解大腸直腸癌復發密碼:免疫治療首度跨足「早期腸癌」的術後輔助治療

血液腫瘤科/細胞治療中心 陳駿逸醫師 美國FDA 近期核准免疫檢查點抑制劑(Atezolizumab)用於第3期具備有dMMR 大腸直腸癌的術後輔助治療,大幅降低癌症復發風險,為早期腸癌治療帶來重大突破。   在臨床診間裡,許多結腸癌患者在順利完成手術、切除腫瘤後,最常焦慮詢問的問題往往是:「醫師,腫瘤都切乾淨了,真的不會再復發嗎?我們還能做些什麼來封死癌症的後路?」   過去,針對第三期大腸直腸癌患者,標準的術後輔助治療主要依賴化學治療(例如:mFOLFOX6 處方:含Oxaliplatin、亞葉酸鈣 Leucovorin 及氟尿嘧啶 Fluorouracil)。化療就像是全城大掃除,能盡可能清掃殘存的癌細胞;然而,對於部分特定基因型態-特別是具備錯配修复缺陷(dMMR, mismatch repair deficient)的患者而言,單純依賴化療的防護網仍有補強空間。   基因修復系統失靈?當癌細胞穿上「隱形斗篷」 dMMR 基因缺陷會使得癌細胞產生大量突變蛋白,雖容易被免疫系統識別,卻常利用 PD-L1 機制逃避打擊,這正是免疫治療發揮優勢的切入點。   什麼是 dMMR(錯配修復缺陷)?我們可以把細胞內的 DNA 複製過程,想像成工廠的精密印刷流水線。正常情況下,細胞內有一套高效的「校對與除錯團隊」(MMR 系統),只要印刷出錯(DNA 錯配),這套系統就會立刻更正。 但當這套校對系統故障(即 dMMR)時,基因複製錯誤就會大量地累積。這就像是印刷廠印出了一堆滿是錯字的文章。在醫學上,這些累積的基因突變會產生許多異常的「新抗原(Neoantigens)」。   想像我們體內的 T 細胞(免疫大軍)是最新銳的防空防禦系統,而 dMMR 的腸癌細胞因為滿身都是異常突變,身上就像掛滿了高調的紅氣球,本該極易被雷達鎖定並精準摧毀。 然而,這群狡猾的癌細胞會進化出一種「隱形斗篷」,也就是表達出 PD-L1 蛋白。當癌細胞的 PD-L1 伸出「手」,去握住 T 細胞表面的 PD-1 接收器時,就像是向 T 細胞出示了假的通行證,對防空雷達下達了「熄火指令」。結果,即使免疫大軍路過,也會對癌細胞視而不見。   這就像近期全球高度關注的資安與 AI 防火牆威脅或邊境防禦漏洞,敵人入侵了系統,卻偽裝成系統內部的合法程序,導致防禦的機制全面癱瘓。

防禦再升級!破解大腸直腸癌復發密碼:免疫治療首度跨足「早期腸癌」的術後輔助治療 閱讀全文 »

00022 32

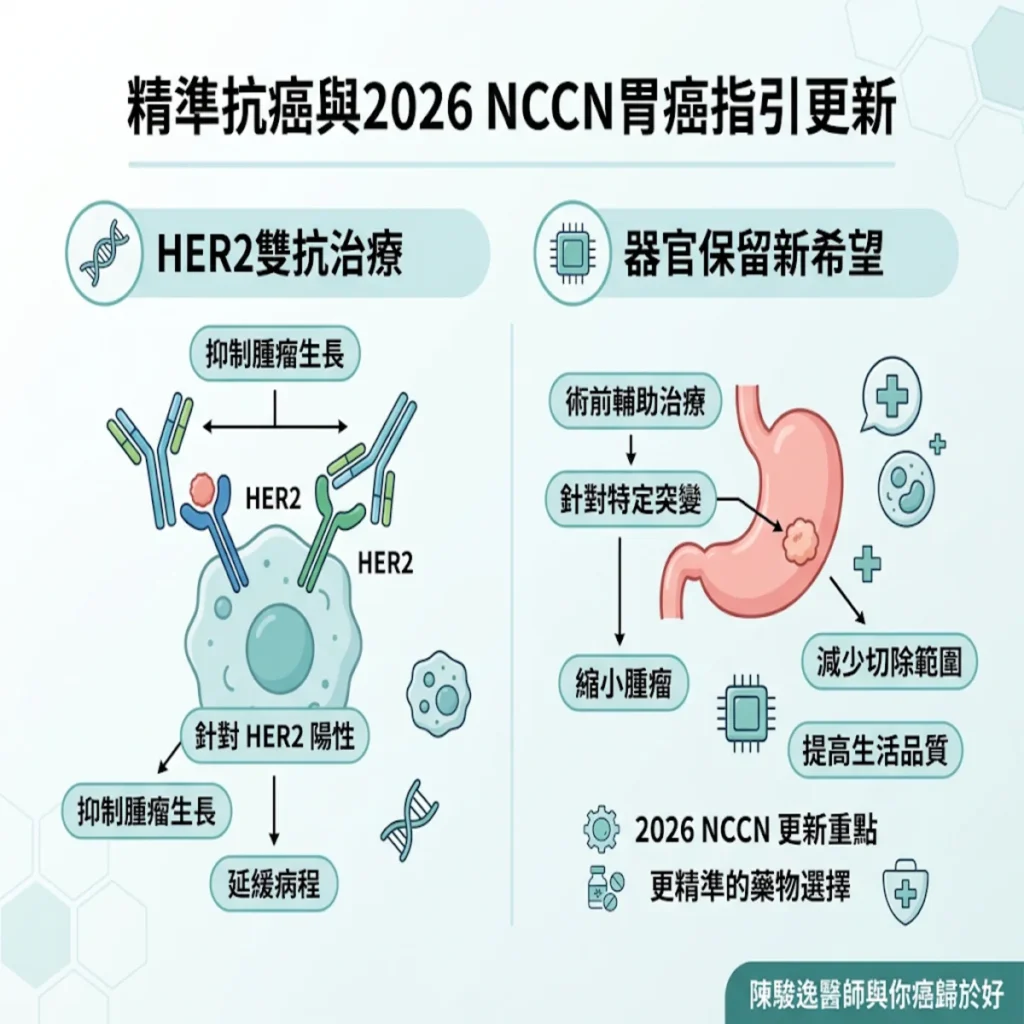
精準抗癌新篇章:NCCN 胃癌指引2026更新,雙抗治療與器官保留帶來新希望

美國國家綜合癌症網絡(NCCN)最新發佈的胃癌臨床實踐指南(v4.2026 版),為 HER2 陽性晚期胃癌、圍手術期免疫治療及器官保留策略帶來了突破性的診療指引。   在診間,我常遇到胃癌患者與家屬懷著不安的心情問我:「醫師,胃癌除了化療之外,還有沒有更新、更好的精準治療方法?能不能在治療的同時,幫我把胃保留下來?」大家的渴望,正是全球腫瘤學界不斷突破的動力。   近日,指引全球癌症治療風向標的美國國家綜合癌症網絡(NCCN)正式更新了《胃癌臨床實務指引》2026年第四版。這次的改版凝聚了多項重大臨床試驗的成果,不僅替晚期 HER2 陽性胃癌患者帶來了突破性的「雙特異性抗體」一線選擇,也上調了關於圍手術期免疫治療的推薦等級,更為部分特定基因型態的患者開啟了「免開刀保留器官」的討論大門。   傳統胃癌治療的困境與精準分層的必要性 傳統晚期胃癌治療面臨到第一線治療方案實在有限、圍手術期後癌症復發率高,以及手術切除後生活品質顯著下降等三大臨床挑戰。   胃癌與胃食道結合部腺癌一直是威脅大眾健康的重大疾病。傳統上,面對晚期或轉移性胃癌,醫師手中的工具大多侷限於傳統化療;即使近年有了標靶藥物與免疫治療,治療的瓶頸依然存在: HER2 陽性晚期胃癌之抗藥與療效瓶頸: 過去針對 HER2 陽性晚期胃癌的一線標靶藥物選擇相對單一,一旦產生抗藥或療效不佳,後續治療手段便十分有限。   圍手術期(手術前後)之復發風險: 局部晚期胃癌患者即便接受了手術,手術後復發率依然不低,如何透過更強效的「圍手術期的手術前輔助/手術後輔助治療」來縮小腫瘤、清除微小轉移,是提升長期生存率的關鍵。 器官切除帶來的生活品質衝擊: 胃切除術(Gastrectomy)搭配嚴格的淋巴結清掃,長期以來是根治胃癌的標準手段。然而,全胃或部分胃切除會嚴重影響患者的飲食習慣、營養吸收與消化功能,大幅降低生活品質。   為了突破這些困境,國際醫界正朝向分子標記指導的精準分層(Biomarker-driven Stratification)發展,針對 HER2 狀態、PD-L1 表達量(CPS/TAP)以及微衛星高度不穩定/錯配修復功能缺陷(MSI-H/dMMR)等特性,量身打造最適合的個人化治療方案。  

精準抗癌新篇章:NCCN 胃癌指引2026更新,雙抗治療與器官保留帶來新希望 閱讀全文 »

00022 31

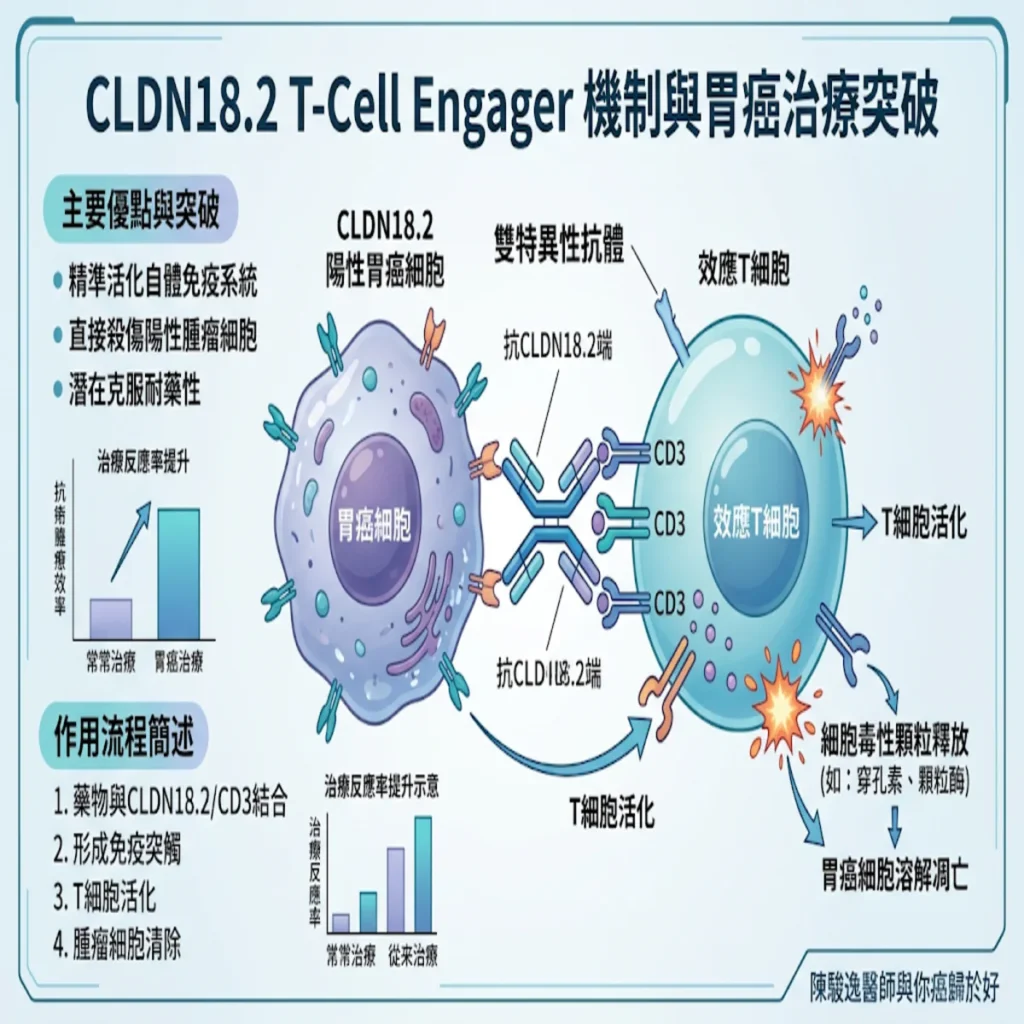
突破胃癌異質性高牆:CLDN18.2 T-Cell Engager 的機制演進與臨床前瞻

血液腫瘤科/細胞治療中心/台灣細胞免疫醫學會 陳駿逸醫師   CLDN18.2 為晚期胃癌與胃食道交界處腺癌的重要靶點,T-cell Engager (簡稱TCE) 透過雙/三特異性結構連結 T 細胞與腫瘤,提供超越傳統單株抗體的新一代治療思維。   在晚期胃癌與胃食道交界處腺癌的治療藍圖中,HER2 與 PD-1 抑制劑雖已開創先河,但腫瘤的高度異質性(Heterogeneity)與免疫冷腫瘤(Cold Tumor)特性,仍讓多數患者面臨治療瓶頸。   近年來,Claudin 18.2(CLDN18.2)成為高度矚目的 Tumor-specific 標靶。隨著單株抗體 Zolbetuximab 的臨床驗證,如何進一步活化患者自身的 T 細胞以達到更深層、持久的腫瘤消退,成為當前抗癌藥物研發的核心焦點。CLDN18.2 T-cell Engager(TCE / BiTE)正是此趨勢下的突破性工具。   一、傳統單株抗體的限制與胃癌異質性的高牆 胃癌異質性強且傳統 ADCC 機轉受限,傳統單抗需要極高的 CLDN18.2 表達量才能發揮作用,導致受惠病人群受限。   晚期胃食道交界處腺癌在臨床處置上極具挑戰性。雖然 CLDN18.2 在正常組織中僅隱藏於胃黏膜上皮細胞間的緊密連接(Tight Junctions),但在腫瘤細胞惡性轉化、細胞極性(Cell Polarity)喪失後,會異常高表達並完全暴露於細胞表面,提供了絕佳的標靶攻擊窗口。   然而,傳統的裸抗體(Unconjugated Monoclonal Antibody,如 Zolbetuximab)主要依賴抗體依賴性細胞毒殺作用(ADCC)與補體依賴性細胞毒殺作用(CDC)。這類機轉在臨床應用上有兩大限制: 門檻高: 臨床試驗顯示,傳統單抗往往需要腫瘤組織達到非常高的表達標準(例如:染色強度大於或等於2+ 且比例大於或等於75%)才能展現顯著的臨床獲益。 異質性逃脫: 胃癌腫瘤內部常存在 CLDN18.2 陰性與陽性細胞交錯的狀況,單純靠 ADCC 難以澈底清除低表達或陰性的腫瘤區域。  

突破胃癌異質性高牆:CLDN18.2 T-Cell Engager 的機制演進與臨床前瞻 閱讀全文 »

00022 29

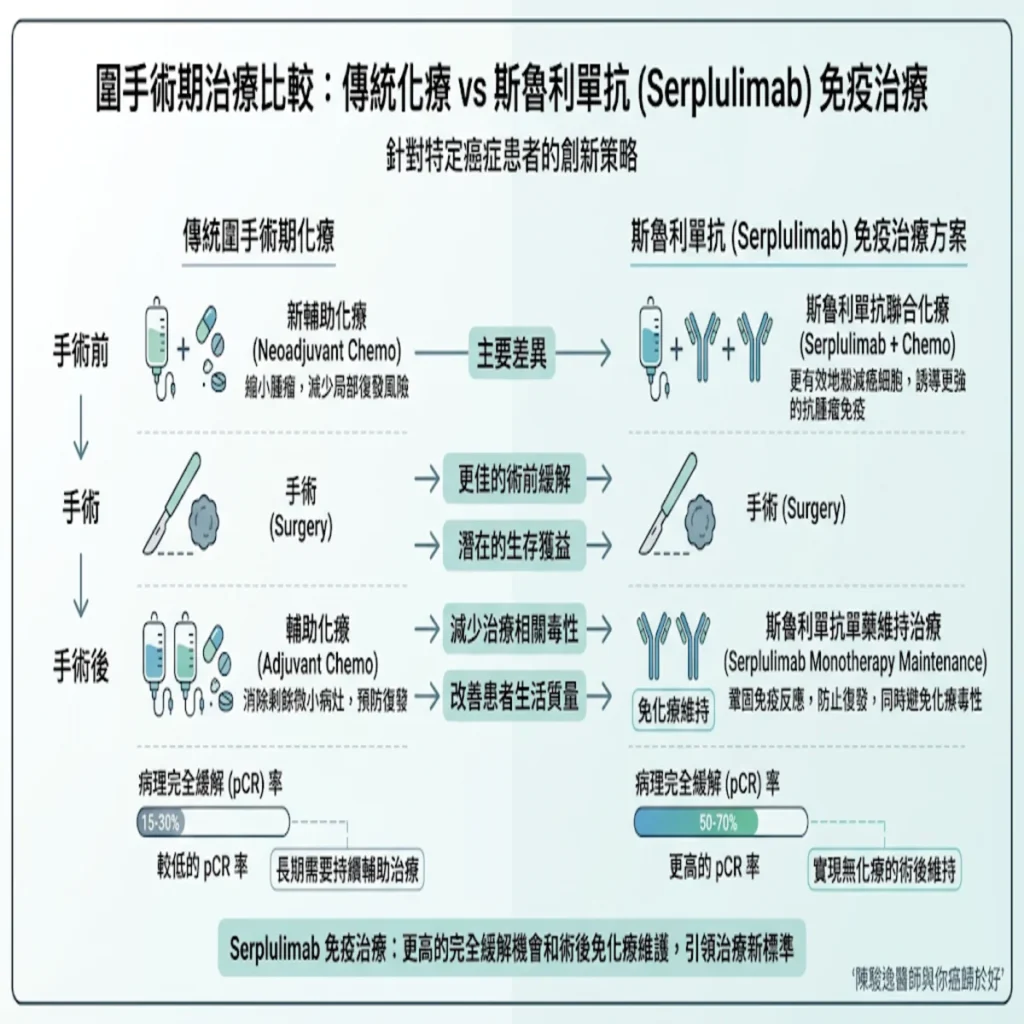
一場革命性的胃癌手術前後治療:Serplulimab 讓「去化療」免疫維持成為可能

局部晚期胃癌治療迎來重大突破,Serplulimab 圍手術期免疫治療模式在 ASTRUM-006 試驗中成功證實,能大幅提升病理完全緩解率(pCR)並延長無事件存活期(EFS),更創下術後不需要再吃化療藥的「去化療」先例。   一、傳統圍手術期治療的「雙重煎熬」 局部晚期可切除胃癌與胃食道結合部腺癌長期以來面臨高復發率與術後累積性毒性的雙重挑戰,傳統化療雖然能降低復發風險,但也常常讓患者因為嚴重的身體負擔而苦不堪言。   在過去,針對局部晚期可切除的胃癌與胃食道結合部腺癌,標準的「圍手術期(Peri-operative)治療」就像是打一場長期的防禦戰。患者在開刀前要先接受幾輪術前輔助化療(Neoadjuvant chemotherapy)來縮小腫瘤、提升 R0 根治性切除術的成功率;開刀順利切除後,為了趕盡殺絕殘存的微小轉移病灶,術後還得繼續接受術後的輔助化療(Adjuvant chemotherapy)。   然而,這套傳統模式對許多病人來說,過程非常艱辛。術後患者的胃腸道功能尚未完全恢復,卻又要面臨像是Oxaliplatin化療帶來的累積性周邊神經毒性、TS-1化療引發的消化道潰瘍,以及嚴重的骨髓抑制。這種「術後繼續化療」的煎熬,就像是剛結束一場高強度的路跑,身體還在修復,卻立刻被要求踩上加速度更高的跑步機,許多患者往往因為無法耐受三級以上的不良反應而被迫中斷治療,導致療效打折。   二、ASTRUM-006 開創的「術後去化療」全新免疫模式 ASTRUM-006 全球多中心的第三期臨床試驗,透過精準篩選 PD-L1 陽性(CPS ≥ 5)族群,採用「術前免疫聯合化療、術後免疫單藥維持」的創新策略,達成增效減毒的卓越效果。   創新試驗設計與治療節奏 相較於傳統 KEYNOTE-585 或 MATTERHORN 試驗在術前與術後皆採用「免疫聯合化療」的重磅轟炸,ASTRUM-006 試驗採取了更精準且具備溫度的策略: 術前輔助階段: 使用抗 PD-1免疫檢查點抑制劑 Serplulimab(4.5 mg/kg)聯合 SOX 化療方案(Oxaliplatin + S-1),每 21 天為一療程,進行 3 個療程。這一步驟如同在開刀前先派警犬與精銳部隊進行精準打擊,快速縮小腫瘤。

一場革命性的胃癌手術前後治療:Serplulimab 讓「去化療」免疫維持成為可能 閱讀全文 »

00022 28

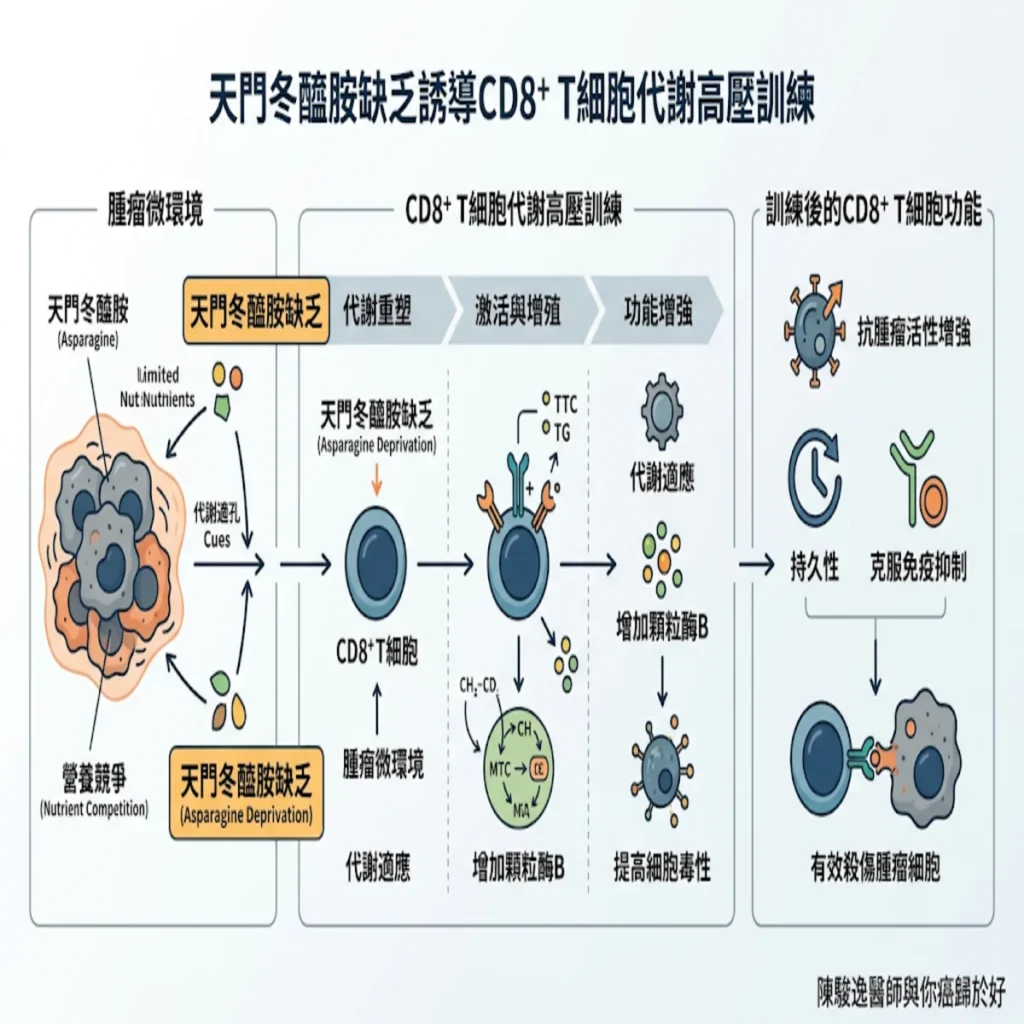
腫瘤微環境中的代謝「高壓電擊」:天門冬醯酸缺乏如何鍛造 CD8+ T 細胞的頂級戰鬥力?

血液腫瘤科/細胞治療中心/台灣細胞免疫醫學會 陳駿逸醫師   L-天門冬醯胺酶(L-asparaginase)傳統上作為抗血癌代謝藥物,最新免疫代謝學研究證實其能透過「天門冬醯胺缺乏」觸發 CD8+ T 細胞的代謝重塑與雙向應激,大幅提升腫瘤浸潤淋巴細胞(TILs)在惡劣腫瘤微環境中的毒殺力與記憶持久度。   身為腫瘤科醫師,我們在臨床面對實體癌免疫治療時,最棘手的莫過於免疫檢查點抑制劑的抗藥性。腫瘤微環境(Tumor Microenvironment, 簡稱TME)就像是一座高壓且極度貧瘠的荒野,腫瘤細胞以掠奪性的葡萄糖與麩醯胺酸(Glutamine)消耗,讓我們的 CD8+ T 細胞因「營養剝奪」而進入耗竭(Exhaustion)的狀態。   過去的傳統思維認為,剝奪氨基酸無疑是雪上加霜,只會讓免疫系統一併癱瘓。然而,2023 年至 2026 年免疫代謝學領域的突破性進展,徹底顛覆了這個舊觀念-適度且精準的天門冬醯胺缺乏(Asparagine Deprivation),非但不會壓垮 CD8+ T 細胞,反而是一場極具前瞻性的「代謝高壓特訓」。   實體癌 TME 的代謝陷阱與 CD8+ T 細胞的耗竭困境 實體癌細胞高度依賴天門冬醯胺與其他養分進行快速增殖,並塑造缺氧、低糖、高壓的腫瘤微環境,直接抑制 CD8+ T 細胞的粒線體功能與抗原反應,導致免疫檢查點抑制劑治療失敗。   在實體癌(如:復發轉移性鼻咽癌、胃癌、膀胱癌)的治療中,腫瘤細胞展現出驚人的代謝掠奪能力。傳統醫學早已發現,許多癌細胞因天門冬醯胺合成酶(ASNS)表現不足,高度依賴外源性 L-天門冬醯胺(L-asparaginase)來維持運作;這也是為什麼 L-asparaginase(L-ASP)能長期作為治療急性淋巴性白血病的招牌「餓死戰術」。   然而,當這場養分爭奪戰發生在實體腫瘤的微環境中時,CD8+ T 細胞同樣會遭遇嚴重的營養脅迫: 代謝競爭與能量竭盡: 腫瘤細胞掠奪了環境中的關鍵氨基酸與葡萄糖,造成 T 細胞內部的糖解作用(Glycolysis)與線粒體呼吸鏈受阻。   效應功能喪失: 缺乏足夠的營養支援,CD8+ T 細胞無法順利分泌干擾素(IFN-γ)與顆粒酶 B(Granzyme B),轉而表現免疫檢查點受體(如 PD-1, TIM-3, LAG-3),陷入免疫耗竭。

腫瘤微環境中的代謝「高壓電擊」:天門冬醯酸缺乏如何鍛造 CD8+ T 細胞的頂級戰鬥力? 閱讀全文 »